

中国农业科学 ›› 2026, Vol. 59 ›› Issue (21): 4697-4709.doi: 10.3864/j.issn.0578-1752.2026.21.001
虞布卡1( ), 谭瑗瑗3, 舒庆尧1,2()
收稿日期:2026-03-08
接受日期:2026-05-01
出版日期:2026-11-01
发布日期:2026-11-06
通信作者:
联系方式:
虞布卡,E-mail:22416119@zju.edu.cn。
基金资助:
YU BuKa1(), TAN YuanYuan3, SHU QingYao1,2()
Received:2026-03-08
Accepted:2026-05-01
Published:2026-11-01
Online:2026-11-06
摘要:
上游开放阅读框(upstream open reading frame,uORF)是位于真核生物mRNA 5′非翻译区(5′UTR)的关键顺式作用元件,在基因翻译和性状形成调控中发挥重要作用。uORF主要通过漏扫描、翻译重起始、核糖体停滞或触发无义介导的衰变等机制拦截扫描中的核糖体,进而抑制下游主阅读框(mORF)的翻译。这种抑制作用的强度高度依赖于uORF起始密码子两侧序列及RNA二级结构等特定的基因组结构特征。该机制赋予了植物在不改变转录的前提下,敏锐响应外部环境信号的能力,在维持正常生长发育和逆境适应的动态平衡中发挥着独特作用。进化分析表明,具有适应性优势的uORF在正向自然选择驱动下往往被保留并呈现高度保守性,同时,植物群体中自然发生的变异uORF序列能够显著微调目标基因的翻译效率,是驱动作物群体抗逆响应和农艺表型多样性分化的重要遗传基础。随着高通量组学技术的发展,大量潜在功能性uORF的翻译图谱被精准解析,为后续的靶向编辑奠定了坚实的数据基础。相较于启动子或3′UTR等其他区域的编辑,靶向uORF具有多效性低、预期性强且无需引入外源序列的显著优势。可通过CRISPR/Cas9、引导编辑(prime editing)等基因编辑技术实现uORF长度的改变、Kozak序列修饰,以及偶联环境响应型uORF等多种工程化策略。这些微调基因表达的策略能够突破传统强启动子过表达引发的负面多效性瓶颈,实现目标基因表达量的适当上调。通过编辑uORF精准调控内源目标蛋白丰度在改良作物广谱抗病性、耐逆性,优化生育期等发育性状,以及提升维生素含量等营养品质方面存在巨大的潜力。本文以建立基于uORF编辑的高效作物精准育种技术体系为目标,阐述了uORF的主要特征特性及其分子调控机制,梳理了uORF编辑的策略及其在性状改良应用中取得的进展,探讨了uORF编辑在作物精准育种中的应用前景和面临的挑战,提出了结合深度学习模型提升uORF编辑效果及其可预见性的策略和途径。
虞布卡, 谭瑗瑗, 舒庆尧. 基于uORF编辑的作物精准育种研究进展与展望[J]. 中国农业科学, 2026, 59(21): 4697-4709.
YU BuKa, TAN YuanYuan, SHU QingYao. Progress and Prospects of Crop Precision Breeding Based on uORF Editing[J]. Scientia Agricultura Sinica, 2026, 59(21): 4697-4709.

图1
uORF分类 A:根据uORF与mORF的位置关系分类;B:根据uORF编码的多肽是否发挥作用分类"

图2
真核生物帽子依赖性翻译起始与核糖体循环模式图 真核生物蛋白翻译可分为9个步骤[27]。(2)三元复合物形成:真核生物翻译起始因子eIF2与GTP和起始甲硫氨酰-tRNA(Met-tRNAi)结合,形成三元复合物。(3)43S前起始复合物形成:TC进一步招募eIF1、eIF1A、eIF3和eIF5等因子,结合到40S小亚基上,组装成43S前起始复合物。(4)—(5)mRNA激活与附着:eIF4F复合物(由帽子结合蛋白eIF4E、支架蛋白eIF4G和解旋酶eIF4A组成)识别并结合mRNA的5′帽子结构。在eIF4B的辅助和ATP供能下,mRNA 5′端二级结构被解开,随后招募43S PIC结合。(6)扫描:43S PIC沿mRNA的5′非翻译区进行扫描,寻找起始密码子。(7)AUG识别与48S形成:当扫描至起始密码子时,Met-tRNAi的反密码子与其配对,导致构象改变和eIF1的释放,形成稳定的48S起始复合物。(8)—(9)大亚基连接与80S形成:在eIF5B的介导下,60S大亚基加入复合物,促使eIF2-GDP及其他起始因子释放。最终组装成具有活性的80S核糖体,进入后续的延伸阶段。(1)终止与回收:当翻译延伸至mRNA的终止密码子时,在释放因子(eRFs)和ABCE1的协同作用下,肽链释放,80S核糖体解离为40S和60S亚基,准备进入下一轮循环"

图3
uORF对mORF的翻译调控 A:无uORF mRNA的核糖体扫描模式;B:含uORF mRNA的核糖体扫描模式。(1)核糖体越过uORF,mORF正常翻译;(2)—(3)核糖体识别uORF,mORF翻译减少(2)或翻译受阻(3)"
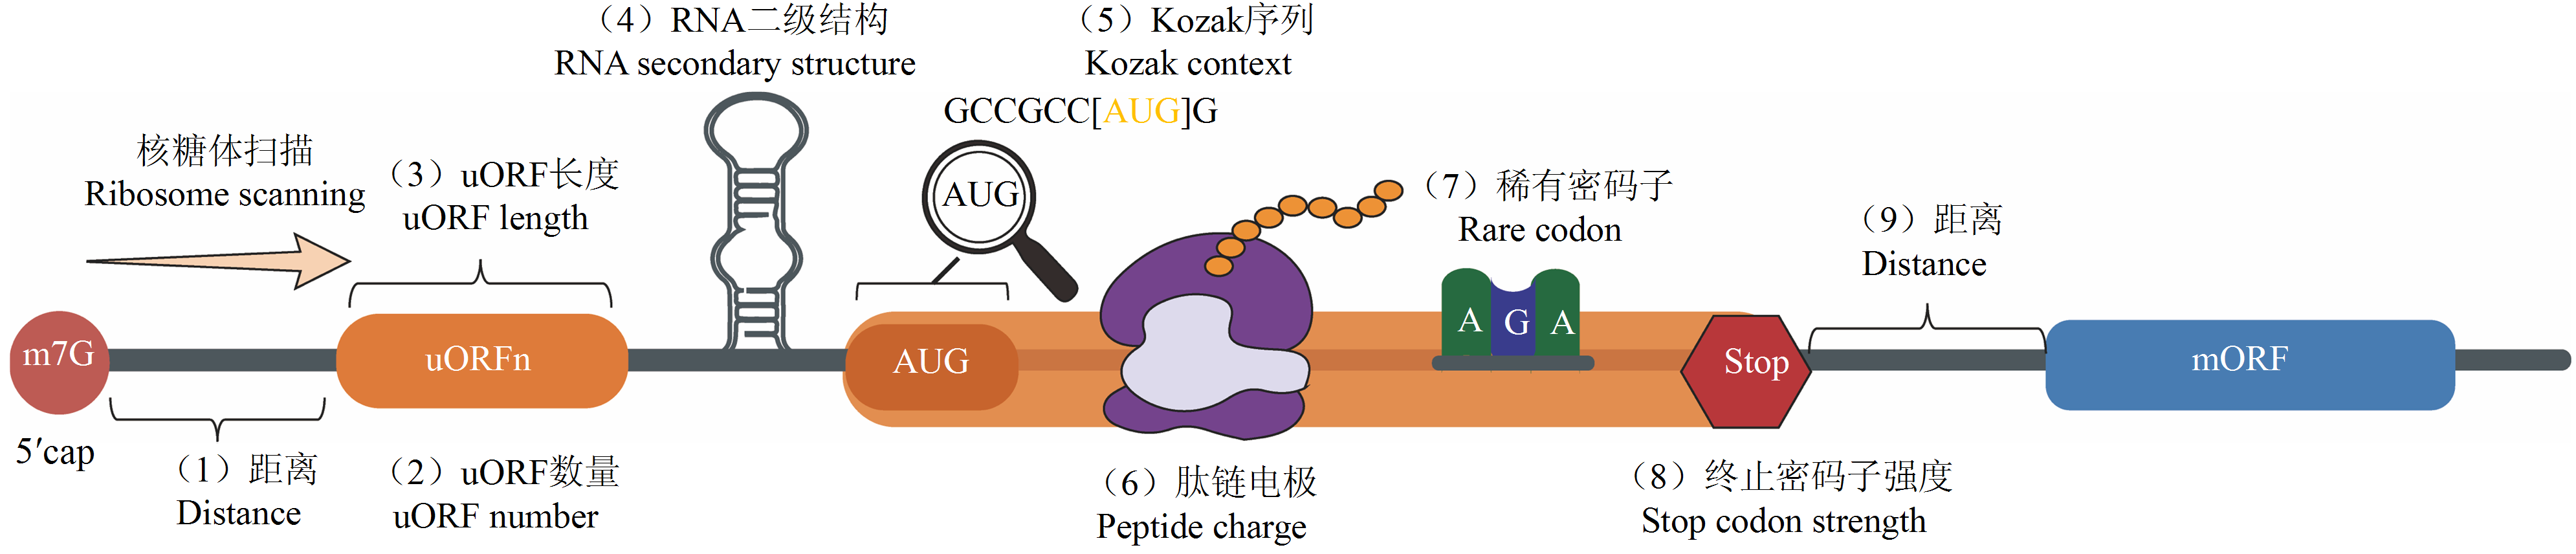
图4
影响uORF翻译效率的关键序列特征 示意图展示了位于mRNA 5′非翻译区(5′UTR)的uORF及其周边顺式元件对核糖体扫描和翻译起始的调控作用。核糖体从5′帽结构进入并进行扫描。影响uORF功能及下游mORF翻译效率的主要因素包括:(1)5′端帽结构与uORF起始位点的距离;(2)uORF的数量;(3)uORF的长度;(4)起始位点附近的RNA二级结构(如发夹结构);(5)uORF起始密码子周边的Kozak序列上下文强度;(6)uORF编码的新生肽链的电荷性质;(7)稀有密码子的存在;(8)终止密码子的强度;以及(9)uORF终止位点与mORF起始位点之间的顺反子间距。这些因素共同决定了核糖体是翻译uORF、在uORF处停滞、发生NMD,还是能够重起始翻译下游的mORF"
表1
uORF编辑与其他调控策略比较"
| 调控策略 Regulatory strategy | 作用区域 Target region | 调控水平 Regulatory level | 作用机制 Mechanism of action | 参考文献 References |
|---|---|---|---|---|
| uORF编辑 uORF editing | 5′UTR | 翻译水平 Translational | 消除uORF对下游mORF翻译抑制,增加核糖体对mORF的翻译 Eliminating uORF-mediated translational inhibition of the downstream mORF, thereby increasing ribosome recruitment and translation of the mORF | [ |
| 启动子编辑 Promoter editing | 启动子 Promoter | 转录水平 Transcriptional | 破坏转录抑制因子结合位点,提高转录效率 Disrupting transcriptional repressor binding sites to enhance transcription efficiency | [ |
| 3′UTR编辑 3′UTR editing | 3′UTR | 转录后水平 Post-transcriptional | 敲除3′UTR负调控区域(通常包含 miRNA特异性识别的顺式元件或形成比较稳定RNA二级结构的区域) Knocking out negative regulatory regions in the 3′UTR (typically containing cis-elements for specific miRNA recognition or regions forming stable RNA secondary structures) | [ |
| 染色体结构重排 Chromosomal rearrangement | 基因组大片段 Large genomic segments | 转录水平 Transcriptional | 通过染色体的倒置或重复,让同一条染色体上的强启动子去驱动弱表达的基因 Leveraging chromosomal inversions or duplications to allow a strong promoter on the same chromosome to drive the expression of a weakly expressed target gene | [ |
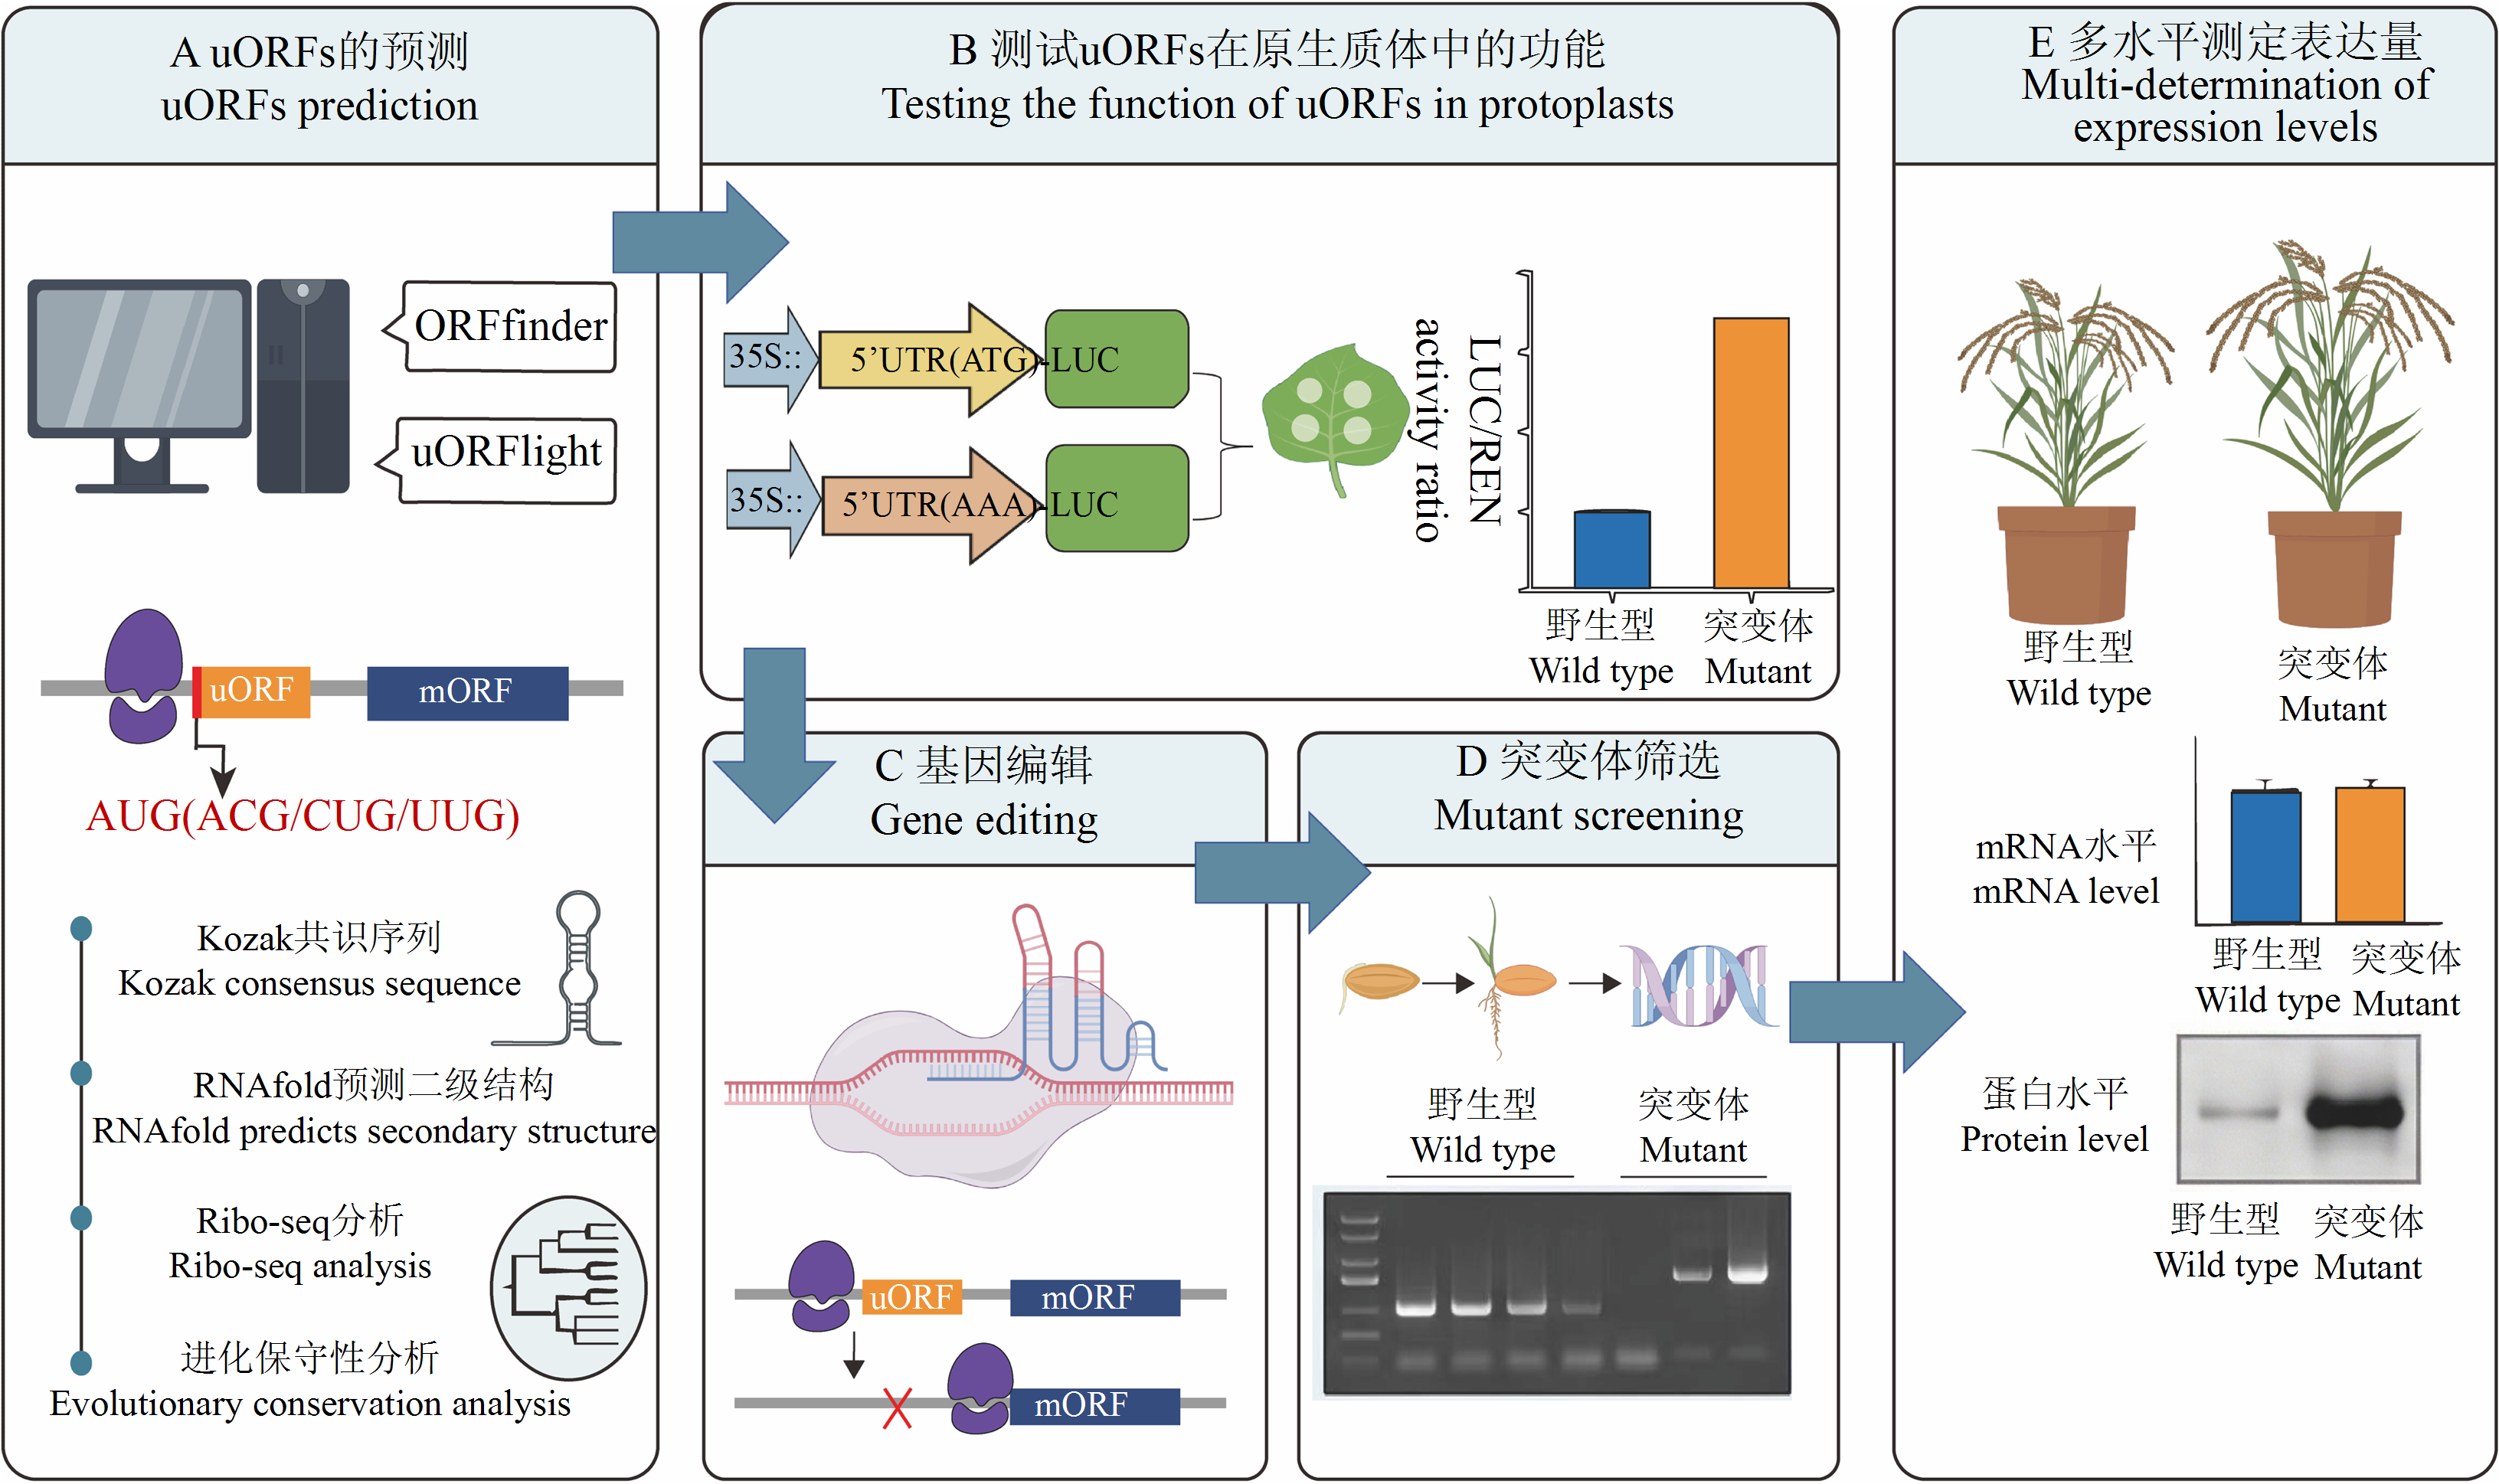
图5
基于CRISPR/Cas9技术的植物uORF功能鉴定与编辑育种流程"
表2
目前主要uORF数据库及鉴定工具"
| 类别 Category | 数据库名称 Name of the database | 适用物种、输入数据 Applicable species or input data | 主要功能与特色 Main functions and features | 参考文献 References |
|---|---|---|---|---|
| 鉴定工具 Identification tool | ORFfinder | 序列 Sequence | NCBI的经典工具。常用于对5′UTR序列进行初步的ORF识别 A classic tool of NCBI. It is often used for the initial ORF scanning of 5′UTR sequences | [ |
| uORF-seqr | Ribo-seq数据、RNA-seq数据、基因组注释文件 Ribo-seq data, RNA-seq data, genomic annotation files | 高效鉴定非AUG起始的近同密码子uORF,并给出每个uORF的显著性评估值 Efficiently identify near-similar codon uORFs that do not start with AUG, and provide a significance evaluation value for each uORF | [ | |
| uORF4u | 序列 Sequence | 支持原核生物预测其核糖体结合位点 Support the prediction of ribosome binding sites for prokaryotes | [ | |
| 数据库 Database | uORFlight | 拟南芥、水稻等 Arabidopsis thaliana, Oryza sativa, etc. | 可在种群尺度评估uORF出现频率,通过数据库挖掘,找出单核苷酸多态性或插入/缺失 By mining the database, it enables the evaluation of uORF occurrence frequencies at the population level and the identification of SNPs or InDels | [ |
| PsORF | 拟南芥、棉花、水稻、玉米等 Arabidopsis thaliana, Gossypium spp., Oryza sativa, Zea mays, etc. | 植物小ORF库,包含uORF、dORF等共5类小ORF Plant small ORF library. It includes five types of small ORFs such as uORF and dORF | [ | |
| uORFdb | 人、拟南芥等 Homo sapiens, Arabidopsis thaliana, etc. | 计算预测、试验文献与群体变异数据深度融合 The deep integration of computational prediction, experimental literature and population variation data | [ |
表3
uORF在作物育种中主要工程化策略"
| 方法 Method | 物种 Species | 基因 Gene | 突变体性状 Mutant trait | 参考文献 References |
|---|---|---|---|---|
| 缺失uORF Delete uORF | 水稻O. sativa | Hd2 | 延迟开花Delay flowering | [ |
| 水稻O. sativa | GLW7 | 改善粒型Improve grain shape | [ | |
| 水稻 O. sativa | GW7 | 增加粒长和长宽比 Increased grain length and length/width ratio | [ | |
| 大麦H. vulgare | Mla13 | 加快免疫应答Accelerate immune response | [ | |
| 生菜L. sativa | GGP2 | 增加维生素C含量Increase vitamin C content | [ | |
| 拟南芥 A. thaliana | bZIP11 | 消除蔗糖的抑制效应 Eliminate the inhibitory effect of sucrose | [ | |
| 生成uORF Generate uORF | 水稻O. sativa | Waxy | 降低直链淀粉含量Reduce amylose content | [ |
| 水稻O. sativa | DLT | 降低株高和分蘖数Reduce plant height and tiller numbers | [ | |
| 改变uORF长度 Change uORF length | 水稻O. sativa | Hd2 | 延迟开花Delay flowering | [ |
| 生菜L. sativa | GGP1 | 增加维生素C含量Increase vitamin C content | [ | |
| 转换uORF种类 Switch uORF types | 水稻O. sativa | GS2 | 增强抗病性Enhance disease resistance | [ |
| 番茄Solanum lycopersicum | RabGAP22 | 增强耐盐性Enhance salt tolerance | [ | |
| 改变uORF起始密码子上下文序列 Mutant uORF initiation codon context | 水稻O. sativa | Waxy | 降低直链淀粉含量Reduce amylose content | [ |
| 番茄S. lycopersicum | GGP1 | 增加维生素C含量Increase vitamin C content | [ | |
| 偶联环境响应型 uORF Coupled environment-responsive uORF | 水稻O. sativa | NPR1 | 抗病但正常生长Resistance but minimal fitness costs | [ |
| 拟南芥A. thaliana | snc1 | 抗病但正常生长Resistance but minimal fitness costs | [ |
| [1] |
doi: 10.1093/nar/gkz681 pmid: 31392980 |
| [2] |
doi: 10.1093/nar/gky188 pmid: 29562350 |
| [3] |
|
| [4] |
|
| [5] |
doi: 10.1104/pp.19.00541 |
| [6] |
doi: 10.1371/journal.pbio.2003903 |
| [7] |
|
| [8] |
pmid: 3516411 |
| [9] |
doi: 10.1016/j.plantsci.2013.09.006 pmid: 24268158 |
| [10] |
doi: 10.3390/ijms21176238 |
| [11] |
doi: 10.1038/nbt.4202 pmid: 30080209 |
| [12] |
doi: 10.15252/embj.201593434 |
| [13] |
doi: 10.1371/journal.pgen.1007523 |
| [14] |
doi: 10.1093/femsre/fux059 pmid: 29281028 |
| [15] |
doi: S0968-0004(19)30055-6 pmid: 31003826 |
| [16] |
doi: 10.1093/nar/gkv018 pmid: 25618853 |
| [17] |
pmid: 12799445 |
| [18] |
doi: 10.1104/pp.17.01060 pmid: 28956754 |
| [19] |
pmid: 7301588 |
| [20] |
doi: 10.1016/j.cell.2014.02.033 |
| [21] |
pmid: 17494029 |
| [22] |
pmid: 16186132 |
| [23] |
doi: 10.1104/pp.19.01549 |
| [24] |
|
| [25] |
doi: 10.1038/s41580-023-00624-9 |
| [26] |
|
| [27] |
doi: 10.1038/nrm2838 pmid: 20094052 |
| [28] |
pmid: 17331561 |
| [29] |
doi: 10.1016/j.isci.2023.106757 |
| [30] |
刘晓倩. 人博卡病毒结构蛋白5’UTR调控mRNA生成及可变翻译的研究[D]. 武汉: 中国科学院大学, 2019.
|
|
|
|
| [31] |
doi: 10.1016/j.celrep.2024.114074 |
| [32] |
doi: 10.1016/j.bpj.2024.09.014 pmid: 39277792 |
| [33] |
doi: 10.1038/s41586-023-06500-y |
| [34] |
doi: 10.1038/s41580-018-0034-x pmid: 30038383 |
| [35] |
|
| [36] |
doi: 10.1038/s41467-025-57659-z |
| [37] |
doi: 10.1038/ncomms11663 |
| [38] |
doi: 10.1016/j.xplc.2022.100457 |
| [39] |
doi: S0981-9428(20)30355-7 pmid: 32738581 |
| [40] |
doi: 10.1111/pbi.v21.7 |
| [41] |
doi: 10.1016/j.xplc.2023.100745 |
| [42] |
doi: 10.1038/s41477-021-01019-4 |
| [43] |
doi: 10.1111/pbi.v22.1 |
| [44] |
doi: 10.1038/s41596-019-0238-3 pmid: 31915386 |
| [45] |
|
| [46] |
doi: 10.1186/s12284-021-00504-w |
| [47] |
|
| [48] |
doi: 10.1105/tpc.114.133777 |
| [49] |
|
| [50] |
|
| [51] |
|
| [52] |
|
| [53] |
doi: 10.1111/pbi.v18.11 |
| [54] |
|
| [55] |
doi: 10.1038/nature22372 |
| [56] |
doi: 10.1016/j.plantsci.2020.110637 |
| [57] |
doi: 10.1111/j.1364-3703.2006.00329.x pmid: 20507437 |
| [58] |
doi: 10.1105/tpc.019349 |
| [59] |
doi: 10.1111/nph.v243.6 |
| [60] |
doi: 10.1038/s41587-023-01707-w pmid: 36894598 |
| [61] |
doi: 10.1007/s11427-024-2588-9 |
| [62] |
doi: 10.1111/pbi.14450 pmid: 39164883 |
| [63] |
doi: 10.1016/j.cj.2024.07.011 |
| [64] |
doi: 10.1038/nbt.4273 |
| [1] | 赵子杰, 宋豪, 董小鸥, 万建民. 转座元件系统介导的大片段DNA定向插入技术研究进展[J]. 中国农业科学, 2026, 59(6): 1141-1156. |
| [2] | 王晓莲, 王春庆, 李佳欣, 李娅毓, 王丽婷, 丁子锐, 陈琪, 田旭斌, 宋震. 基于柑橘叶斑驳病毒的VIGE体系构建与应用[J]. 中国农业科学, 2026, 59(20): 4489-4499. |
| [3] | 李彦, 段笑笑, 王洁, DASHZEVGE Erdenechimeg, 李志娟, 王迁迁, 刘拂晓. A型塞尼卡病毒基因组内保守基序介导翻译调控研究[J]. 中国农业科学, 2026, 59(12): 2740-2749. |
| [4] | 汪炜檬, 魏云晓, 唐云霓, 刘苗苗, 陈全家, 邓晓娟, 张锐. 棉花发根农杆菌转化体系的建立及生根优化[J]. 中国农业科学, 2025, 58(8): 1479-1493. |
| [5] | 罗刚, 程依依, 杨雯, 肖怡梦, 杨铖熹. CRISPR-Cas12a基因编辑技术及其在农业生产中的应用[J]. 中国农业科学, 2025, 58(7): 1434-1450. |
| [6] | 靳亚茹, 陈斌, 王歆凯, 周田田, 李笑, 邓晶晶, 杨郁文, 郭冬姝, 张保龙. 利用基因编辑产生长片段缺失创制低谷蛋白水稻种质[J]. 中国农业科学, 2025, 58(6): 1052-1064. |
| [7] | 徐以恒. “基因编辑农作物”专利规制的困境及出路[J]. 中国农业科学, 2025, 58(5): 831-839. |
| [8] | 曾跃辉, 邹文广, 赵福铭, 肖长春, 黄建鸿, 马彬林, 杨旺兴, 韦新宇, 许旭明. 一个新的水稻颖花开裂基因OsSG2的图位克隆与功能验证[J]. 中国农业科学, 2025, 58(11): 2062-2080. |
| [9] | 许娜, 唐颖, 徐正进, 孙健, 徐铨. 籼粳杂种不育的遗传分析和候选基因鉴定[J]. 中国农业科学, 2024, 57(8): 1417-1429. |
| [10] | 武玉花, 翟杉杉, 普豪祯, 高鸿飞, 张华, 李俊, 李允静, 肖芳, 吴刚, 徐利群. 农业用植物基因编辑产品检测方法研究进展[J]. 中国农业科学, 2024, 57(17): 3318-3334. |
| [11] | 温一博, 陈淑婷, 徐正进, 孙健, 徐铨. DEP1、Gn1a和qSW5组合应用调控水稻穗部性状[J]. 中国农业科学, 2023, 56(7): 1218-1227. |
| [12] | 吴元龙, 惠凤娇, 潘振远, 尤春源, 林海荣, 李志博, 金双侠, 聂新辉. 后基因组时代发展抗除草剂作物的机遇及挑战[J]. 中国农业科学, 2023, 56(17): 3285-3301. |
| [13] | 杨敏,胥华伟,王翠玲,杨护,魏岳荣. 利用CRISPR/Cas9技术研究玉米ZmFKF1在开花过程中的作用[J]. 中国农业科学, 2021, 54(4): 696-707. |
| [14] | 陈晓军,吴凯伸,惠建,白海波,马斯霜,李靖宇. 基于基因编辑技术创制高亚油酸水稻材料[J]. 中国农业科学, 2021, 54(14): 2931-2940. |
| [15] | 李兆伟,零东兰,孙聪颖,曾慧玲,刘凯基,蓝颖珊,范凯,林文雄. 利用CRISPR/Cas9技术定向编辑水稻OsIAA11[J]. 中国农业科学, 2021, 54(13): 2699-2709. |
|
||
